邻近变异的四单倍型 MPRA:背景依赖与非加性
Massively parallel characterization reveals context-dependent and non-additive regulatory effects of closely spaced variant pairs
对7,285对相距不超过75 bp的变异设计全部四种单倍型,区分单变异效应、邻近背景与双变异非加性。关键不只是105/178的比例,而是DESeq2对比、共享参照造成的协方差,以及实验反事实与人群LD可识别性的差别。
本文目录
一个变异是否具有脱离邻近背景的固定功能效应
多数单变异功能实验在固定背景序列中比较两个等位基因。本文改为在同一片段中测量两个邻近位点的全部四种组合,因此可以问:第一个变异的效应,在第二个位点为祖先或派生等位基因时是否相同?两个变异一起出现,是否等于单独作用的组合?
这与把更多相关 SNP 放入多元回归不相同。实验主动构造了某些在人群中极罕见甚至未观察到的单倍型,使功能比较不再完全受自然 LD 约束。但这种设计并未直接给出体内靶基因表达效应,更没有自动建立疾病风险的遗传互作。
本文目前是预印本。最值得学习的是四单倍型设计与统计对比;最需要谨慎的是将筛选子集中的“59%”推广成一般非加性频率。
变异入选、实验单位与质控分母
作者从 Estonian Biobank 的 2,420 人 WGS中筛选变异,要求 MAC>3、基因型缺失率<10%,并结合 callability 与 Roadmap ChromHMM 增强子注释。每一对变异相距不超过 75 bp,且至少一个在 eQTLGen v1 中为强 cis-eQTL 关联,。这是一种富集功能候选的选库策略,不是高 PIP 精细定位真值集。
最终有 6,343 对来自血液相关增强子,942 对来自在超过 85 种组织/细胞中注释为增强子的区域;共 7,285 对。每对合成四种 170-bp 基因组片段,合计 29,140 条,加 860 条对照得到 30,000 条设计序列。
Anc/Der 依据重建的祖先基因组定义,不是参考/替代等位基因,也不是常见/稀有等位基因。四种组合是 Anc/Anc、Der/Anc、Anc/Der、Der/Der;以下以 00、10、01、11 简写。
| 层次 | K562 | GM12878 |
|---|---|---|
| 初始实验重复 | 7 | 7 |
| 保留重复 | 7 | 4 |
| 质控后完整四单倍型集合 | 5,988 | 6,106 |
| 至少一个派生单倍型有差异活性 | 3,408(57%) | 861(14%) |
GM12878 的三个重复被删除,因为 cDNA 丰度与输入 pDNA 丰度高度相关,作者认为信号主要反映质粒数量而非增强子驱动转录。之后要求 oligo 平均原始计数>400,而且同一集合四种单倍型必须都有数据。两细胞系共用的 DA 集合为 662,占 GM12878 DA 集合的 77%。后续背景依赖与非加性分析主要使用 K562。
因此,不能把 K562–GM12878 的 DA 数量差直接解释为真实细胞特异性:两者重复数、有效功效和实验质量不同。“一个细胞系显著、另一个不显著”也不是正式的跨细胞系效应差异检验。来源:主文 Results、Methods,PDF pp.5–7、32–34。
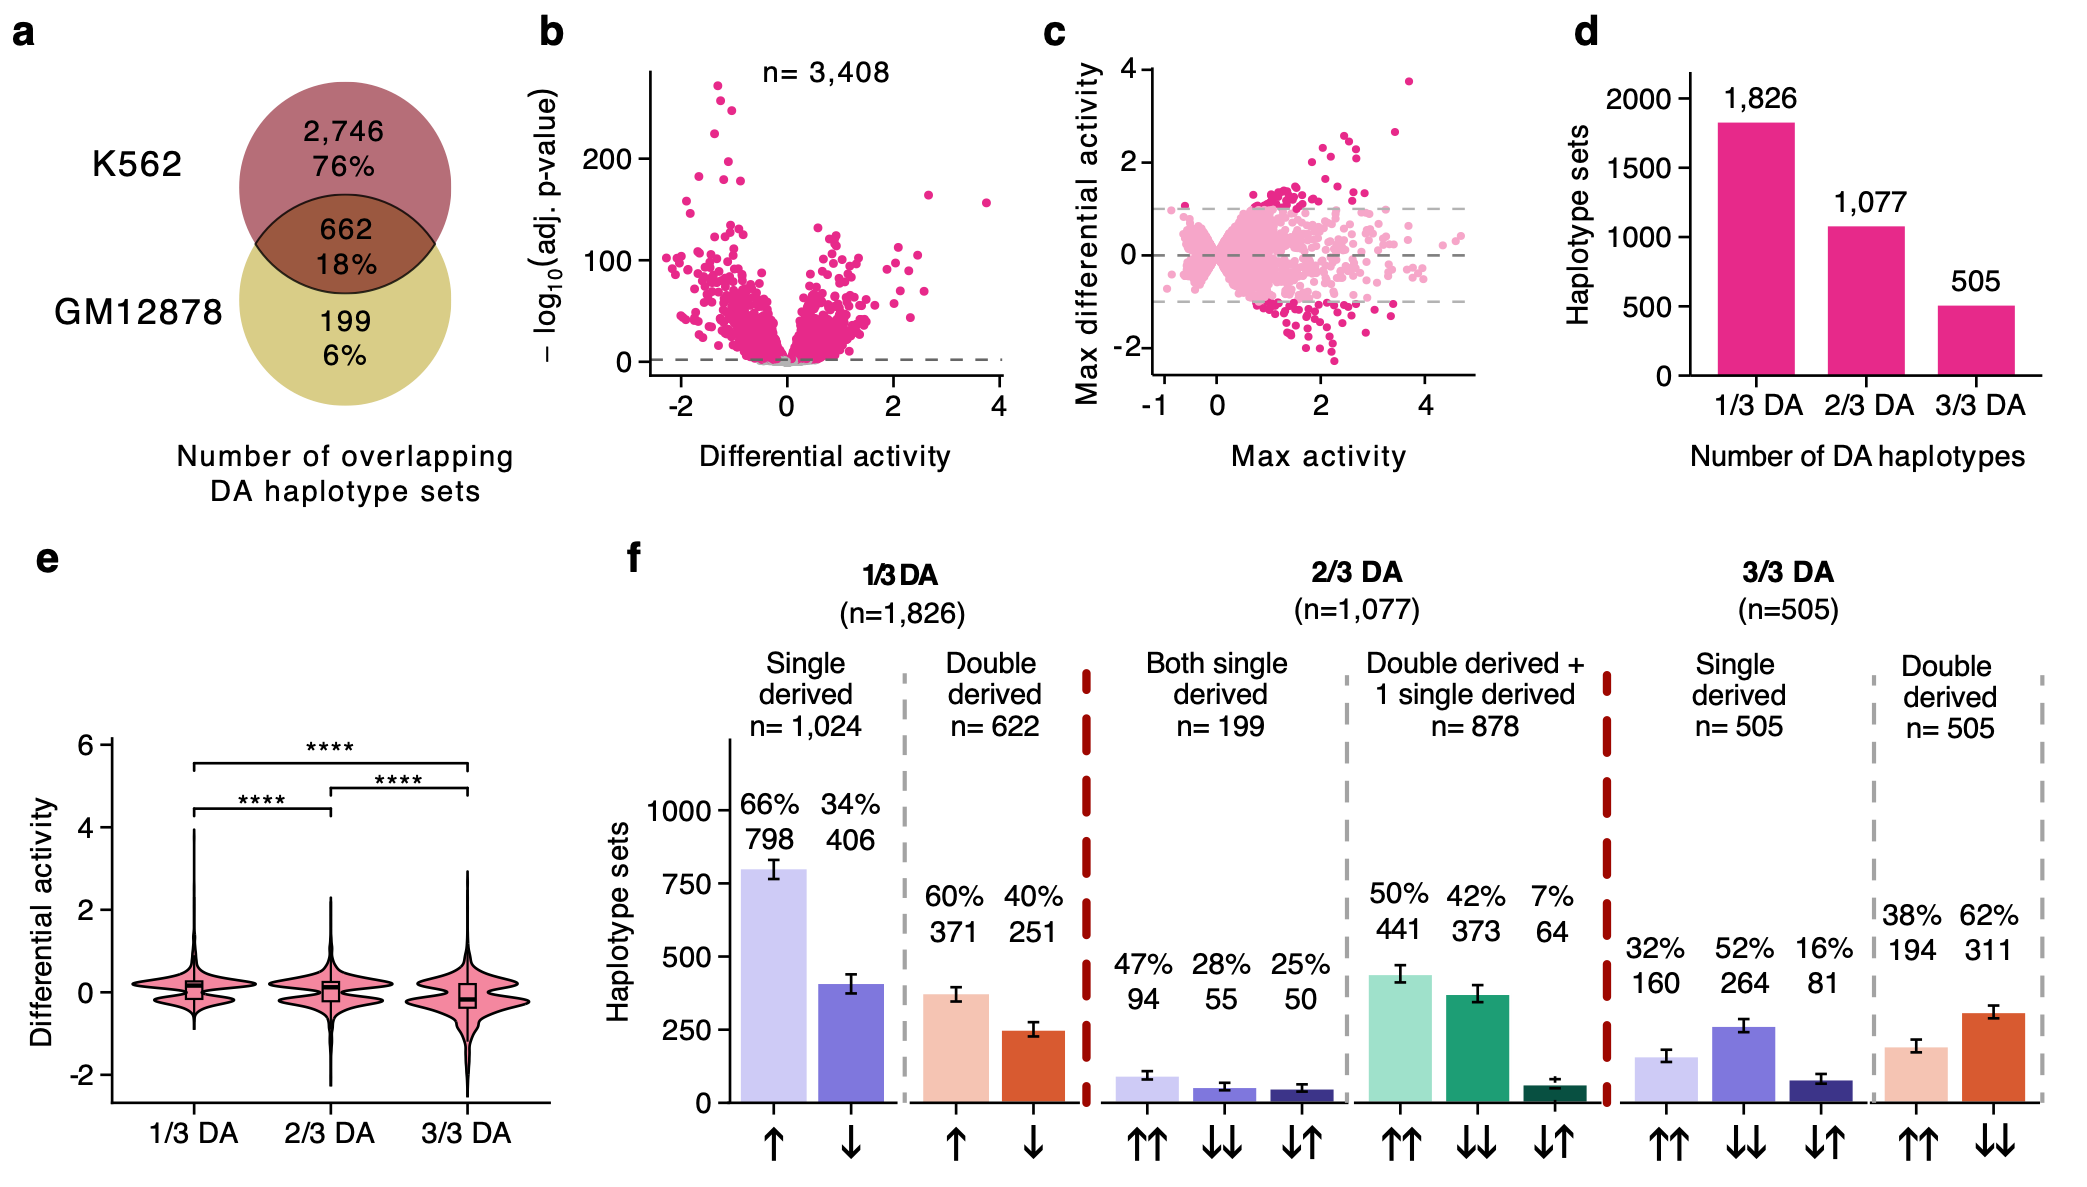
K562的3,408个DA集合来自5,988个质控完整集合。1/3、2/3、3/3表示相对Anc/Anc达到DA阈值的派生单倍型数量,不是非加性交互的检验结果。
Kreevan et al., bioRxiv 2026, Figure 2;从原PDF无损提取图像。 · CC BY 4.0 · 原图未修改 · 原文图 · 放大DESeq2 模型测量的是什么
作者先把同一 oligo 的 barcode 计数汇总,用 DESeq2 的 median-ratio 方式归一化,再以负二项 GLM 估计 RNA 相对 DNA 的活性。概括地说,计数 以均值 与离散度 表示为
其中 是归一化因子。这个一般形式用于说明原文负二项回归,并非本笔记重新拟合的模型。作者的活性分析设计为 ~ material + replicate;差异活性设计为 ~ material + ancestry_combination + material:replicate + material:ancestry_combination。这里 ancestry_combination 指 Anc/Der 单倍型组合,与人类祖源分组无关。
material 区分 RNA 与 DNA;与单倍型的交互对比,比较“RNA/DNA 的差异”而不只是 RNA 数量差异。对各派生单倍型相对 Anc/Anc 的差异活性(DA),作者使用 Wald 检验及 Benjamini–Hochberg 校正,阈值为 adjusted 。
设四种单倍型的 log2 RNA/DNA 活性为 ,则
DA 是这些差值,而不是 eQTL 回归系数。一个片段的相对活性差异可统计显著,却不代表它在该报告体系中具有很强的绝对增强活性。作者用 scrambled 对照的中位活性 0.02 作背景参照,报告血液特异和广泛活性增强子 DA 单倍型中分别只有约 43% 和 54% 超过该背景。解读功能筛选时,差异可检测性与绝对活性应分开。
显著性模式揭示候选背景效应,但不是交互检验
K562 的 3,408 个 DA 集合中,1,826 个只有一个派生单倍型达到 DA 阈值,1,077 个有两个,505 个有三个。作者用这些组合展示:一个派生等位基因的效果可能随邻近位点改变,甚至两个单变异分别产生变化,双派生状态却接近祖先状态。
不过,1/3、2/3、3/3 首先是阈值分类。从“某个单倍型显著、另一个不显著”推导背景依赖,还需要直接比较相应效应,而不能只比较标签。例如,置信区间宽度不同就能改变显著性类别,即便两种背景下效应估计十分接近。
作者另利用 1,426 个出现在两种不同变异配对中的重复变异。157 个在两种配对背景均为 DA,其中 35 个方向相反;536 个只在一种背景为 DA,733 个在两种背景均不显著。该结果提示单变异注释的可迁移性有限,但 Figure 3 的两个 170-bp 片段并不完全相同:示意图给出的重叠长度为 136 bp 或 156 bp 等,侧翼序列也随配对位置改变。因而此分析评估的是更广义的片段/邻近背景依赖,不能把全部差异唯一归于“只换了另一个位点的一个碱基”。固定片段中的完整四单倍型对比具有更强的控制意义。来源:PDF pp.8–12,原文 Figure 3 所在页。
非加性的零假设及作者实际采用的分类规则
四单倍型允许构造一个明确的二阶对比:
表示在 log2 活性差尺度上的加性。若令 为 RNA/DNA 活性比,则相同零假设等价于
因此,作者检验的加性对应原始活性比上的乘性关系,而不是简单要求两个单变异造成的原始转录量变化相加。所有“增强”“缓冲”“次加性”的表述都应保留这个尺度。
作者并没有对全部 5,988 对统一检验 。其高置信(HC)集合先要求:四个单倍型中至少一个 ,三个派生单倍型中至少一个 且 DA adjusted ,得到 178 对。注意 是绝对值条件,可以包括强抑制,不能改写为只选择高增强活性。
随后分别计算观察值 与加性预期 的 95% 置信区间;后者通过合并两项标准误得到。区间不重叠时归为 non-additive,重叠则归为 additive。按此规则,105/178(59%)被归为非加性,剩下 73 对归为加性。来源:PDF pp.15–17、33–34。
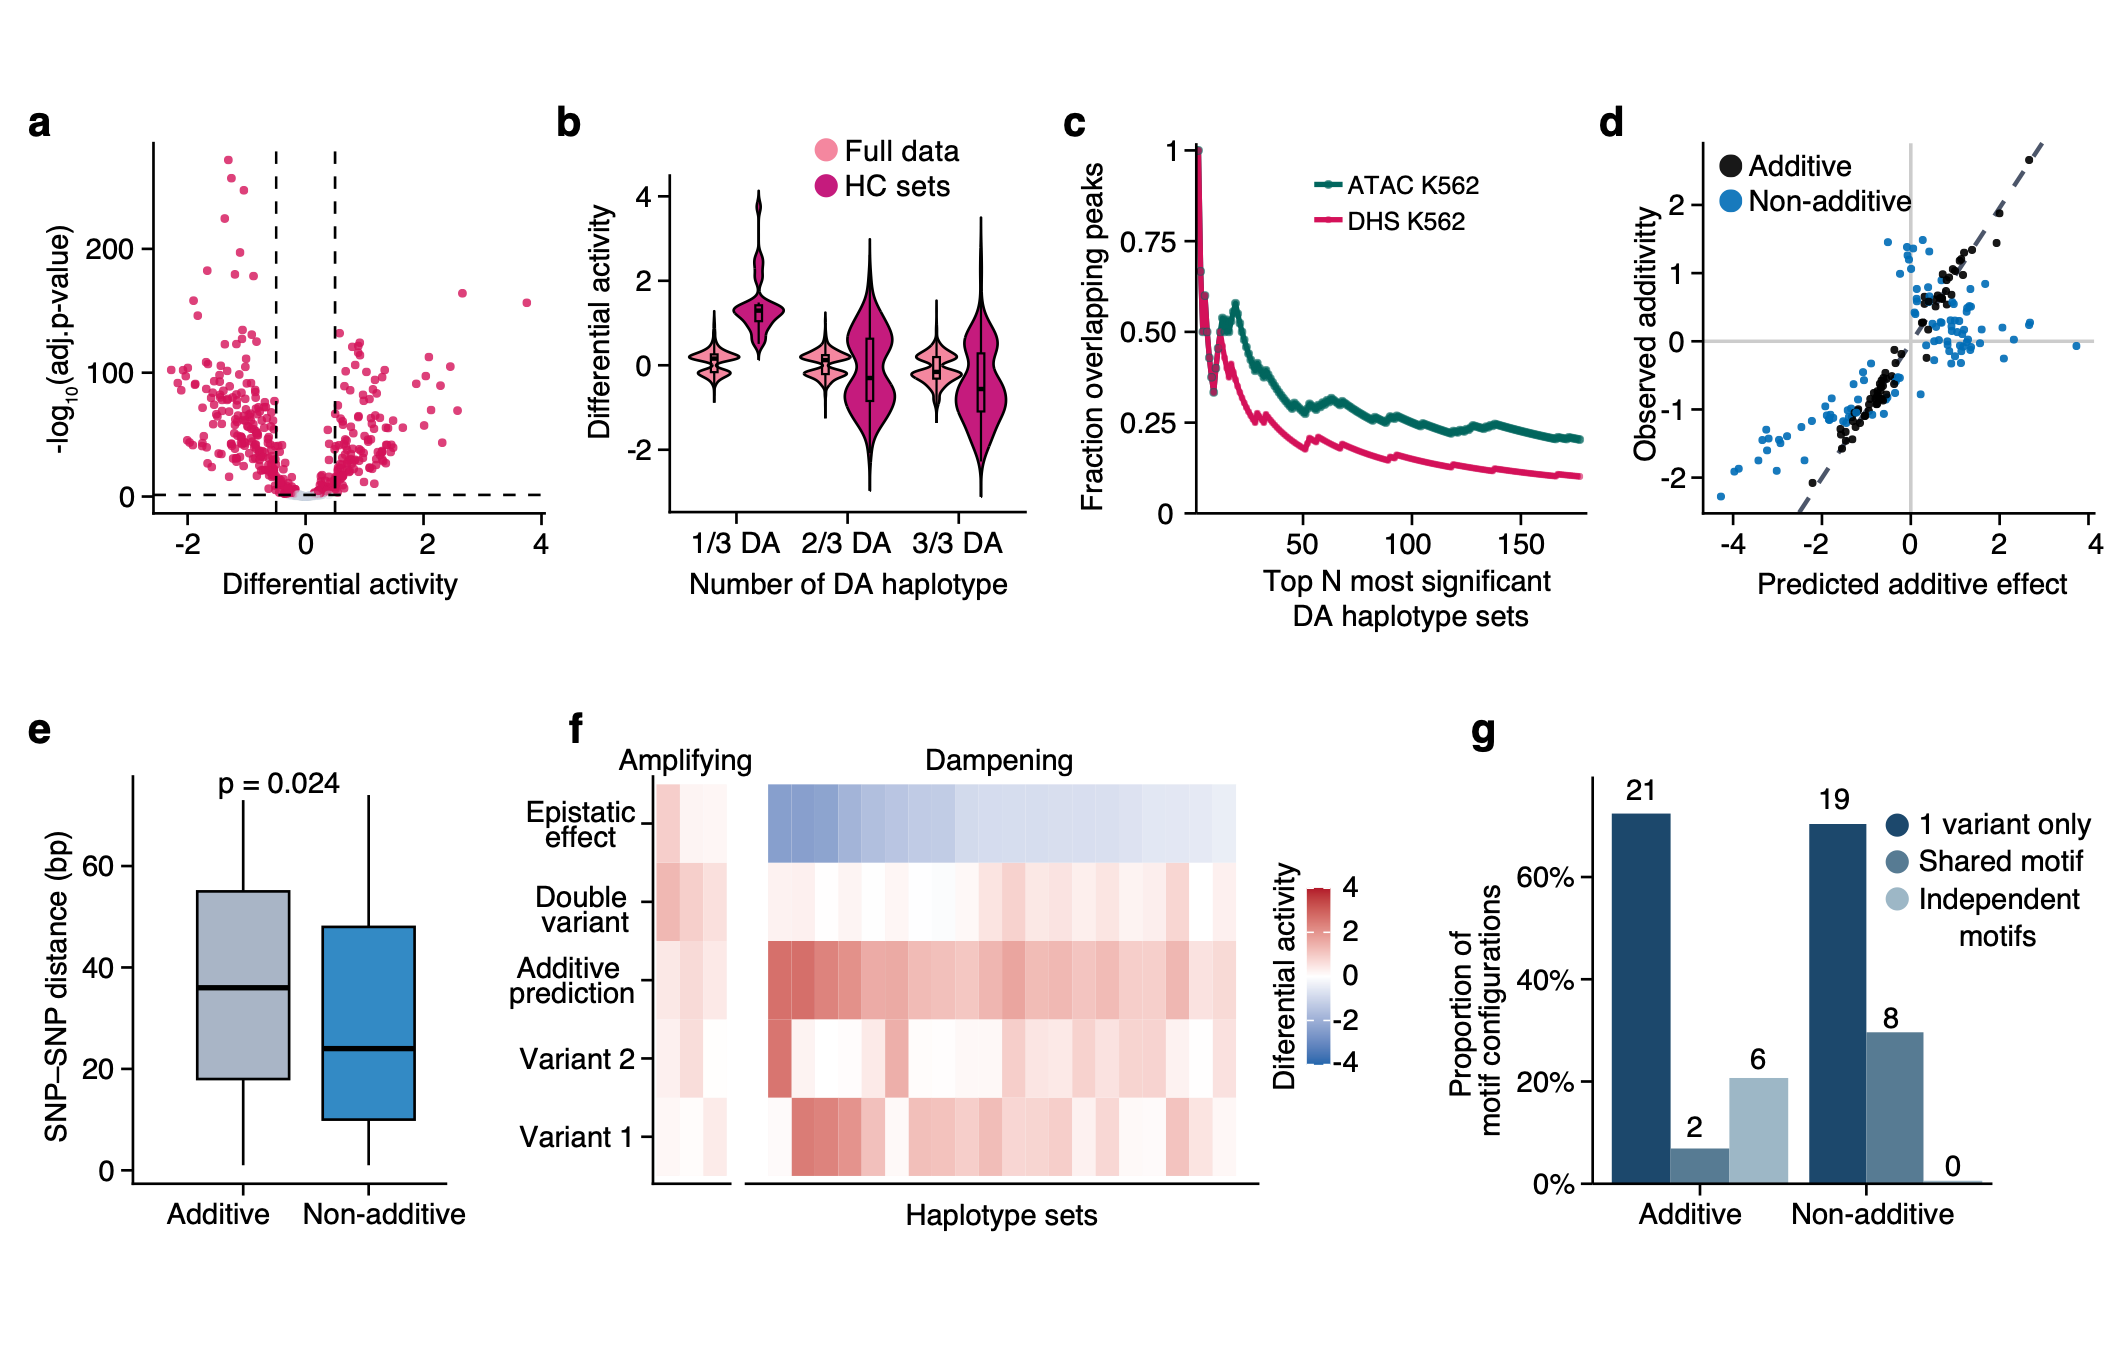
非加性比例来自经过活性和DA幅度筛选的178个集合。观察量与加性预期均在log2活性差尺度上;作者按两个95%区间是否重叠分类。
Kreevan et al., bioRxiv 2026, Figure 5;从原PDF无损提取图像。 · CC BY 4.0 · 原图未修改 · 原文图 · 放大对非加性分析的统计评价
第一,59%是条件于强活性、强差异和该分类规则的比例。候选库先被 eQTL 和增强子注释富集,HC 又从同一实验结果中选择强信号。它既不是 7,285 对中的普遍发生率,也不是全基因组非加性率,更不能与筛选方式不同的其他 MPRA 比例直接排名。
第二,区间重叠并不证明加性。它最多表示未通过本研究的非重叠规则;要支持“效应足够接近加性”,需要预先定义具有生物意义的容许偏离并进行等效性分析。
第三,非重叠规则不同于对 的单一 Wald 检验。三个 DA 都共享 Anc/Anc 参照,其估计误差相关。用四种活性估计的协方差矩阵 表示,令 对应 ,则一个直接二阶对比应使用
这是本笔记的统计推导。作者 Methods 说明合并标准误,但没有在正文中完整列出共享参照的协方差处理。因此不能声称其分类规则就是一个已校准的 5% 交互检验;同样,在未审查实现和原始输出前,也不能武断断言作者一定忽略了所有协方差,或确定偏差方向。
第四,DA 的 BH 校正针对 DA 对比,不自动等于非加性 的家族错误率控制。更清晰的后续分析可在同一负二项模型中编码两个等位基因及其组合,并检验 material × allele1 × allele2 对应的二阶活性差;明确每个变异对一个检验、使用联合协方差,并对该检验家族另行控制 FDR。HC 筛选的影响可用预先确定的活性过滤、独立实验重复或保留选择步骤的模拟/重抽样来评估。这些是改进建议,不是本文已完成的再分析。
距离、频率与 motif 证据分别支持到哪一步
在 HC 集合中,非加性与其余对的中位间距分别为 24 bp 和 36 bp,Wilcoxon 。而在更大库中,距离与 DA 幅度的关联不显著(ANOVA )。两者不矛盾:前者比较组合关系,后者比较单倍型差异的大小;分析人群和筛选条件也不同。
低频/稀有组合更容易出现 DA,但在已判为 DA 的单倍型中,效应大小未显示清楚的频率关系。作者估计稀有单倍型的富集幅度约 OR=1.11。这个结果不能用于断言本实验发现了稀有变异必然具有大效应,也不能仅凭未观察到的单倍型证明净化选择。2,420 人 WGS 下的“未观察到”还可能来自稀有程度、起源时间和人群历史。
motif 分析也呈现层次差别。HC 中总体 motif 数量和是否含 motif 没有明显加性/非加性差异;差异更多体现在变异与 motif 的位置组合。Figure 5g 中,加性组的单变异覆盖/共享 motif/独立 motif 实例为 21/2/6,非加性组为 19/8/0,配置分布 Fisher 检验 。加性配置实例总数超过有 motif 重叠的集合数,说明部分配置不是互斥集合,不能把每个柱子都当作独立样本相加。
这些结果与局部序列组织可能影响非加性相容,但并非 TF 实际占据、结合合作或饱和机制的直接验证。效应方向同为增加时,双派生效应经常小于两个单派生效应之和,可以由饱和响应解释;尚需内源编辑或结合测量区分具体机制。
三个位点说明实验与人群遗传证据如何衔接
chr17:完全 LD 下的功能冗余。 rs35689157 与 rs77232433 相邻,在 EstBB 中 ,只观察到约 94% 的 Anc/Anc 和约 6% 的 Der/Der。实验中任一单派生状态都降低活性,双派生再下降有限,与二者扰动同一局部调控特征相容。两者覆盖预测 ZNF184 motif,但这不是结合实验证据。
其 derived alleles 在 eQTLGen 与 IKZF3 表达升高相关,在 K562 报告系统中却降低活性。作者明确讨论了方向不一致;本笔记也不将其修补成“该增强子降低 IKZF3 导致疾病”的完整机制链。短片段、报告启动子、细胞背景及内源染色质连接都可能造成不同读数。
chr8:57 bp 的间隔与局部补偿。 rs373143737–rs56094005 的单变异与双变异活性不同,只有一个变异直接覆盖作者预测的 motif。该例提示已知 motif 扫描不是功能效应的完整解释,也不保证每个产生效应的碱基都位于当前 motif 模型中。
chr2:近距离不等于高相关。 rs11694743–rs549250007 仅距 12 bp,,但 。频率不对称使两个 LD 指标呈现不同信息;某一 derived allele 单独作用有限,却能改变罕见邻近变异的组合效应。物理距离、共现频率和实验互作应分别记录。
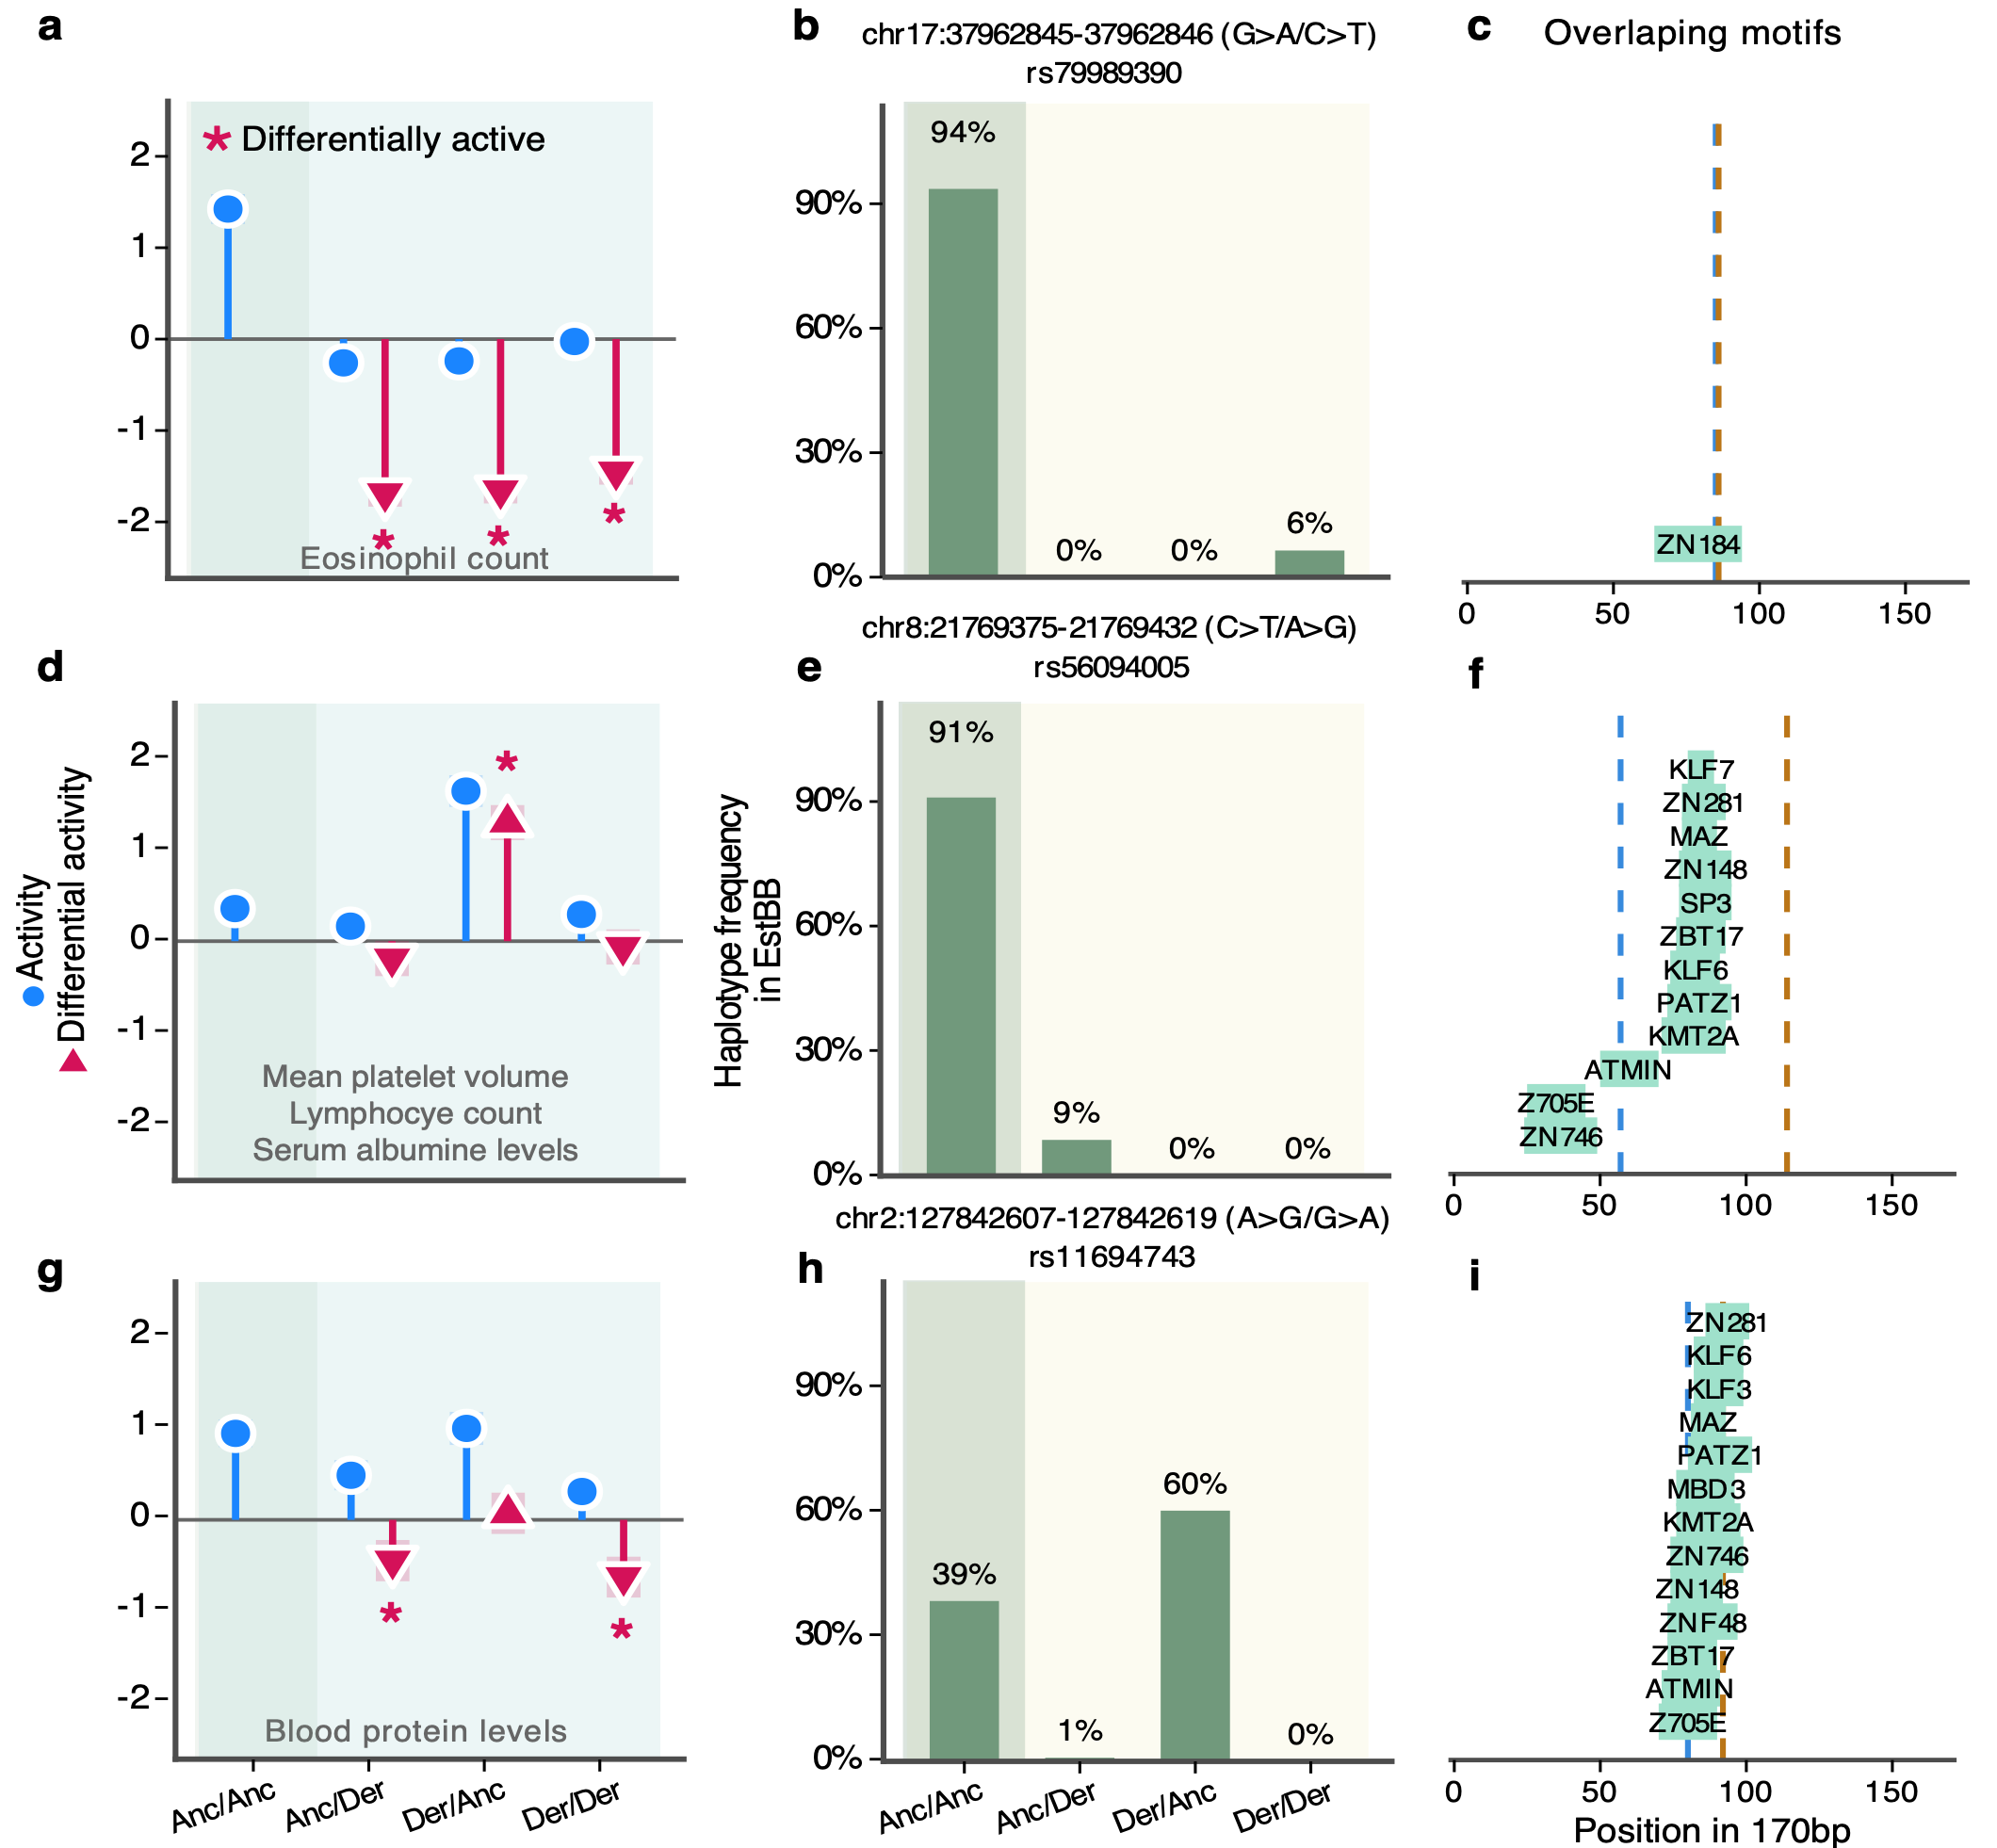
chr17例子只有两种单倍型在EstBB观察到,却在实验中测量全部四种;chr2的两个变异仅距12 bp但r²很低。实验可操纵性与人群关联中的可识别性不可混同。
Kreevan et al., bioRxiv 2026, Figure 6;从原PDF无损提取图像。 · CC BY 4.0 · 原图未修改 · 原文图 · 放大对功能先验、fine-mapping 与单细胞遗传学的启示
以下是研究设想,而非作者已开发的方法。
先区分功能可操纵性与关联可识别性。 chr17 的实验能够制造自然样本中不存在的单突变状态,但若人群只有 00 和 11,观察性关联数据依然不能单独区分两个主效应与交互。MPRA 为反事实功能提供信息,并不会凭空增加 GWAS 设计矩阵的秩。向 fine-mapping 注入单倍型证据时,要明确哪些参数由人群数据识别、哪些主要依赖功能实验或先验。
把单变异分数扩展为有背景的功能证据。 可比较 与 ,并对可观测的两位点背景报告预测稳定性。这样的局部二阶信息可用于识别需要单倍型建模的位点,但不应直接当作交互 PIP。与前一期 AlphaGenome 低估研究 配合阅读时,要分开“幅度不足”和“背景依赖”两个问题:放大独立 SNP 分数未必能修复非加性。
控制验证泄漏与细胞背景。 一个变异多次出现在重叠片段中时,随机按 oligo 划分训练/测试会共享序列和位点信息。更合适的验证按位点/LD 区块隔离,并保留不同细胞类型和内源实验作为迁移检验。单细胞 QTL 的细胞数不能替代独立 donor 数,也不能把 K562 的相对报告活性当作目标细胞中 eQTL 效应方向的真值。
阅读评价与资料范围
**评价:**四单倍型实验比单变异筛选更接近局部调控语法的问题,完整 LD 与低 位点的并列分析尤其有价值。最强证据是特定片段中实测组合效应偏离简单加性;较弱之处是高信号子集比例的泛化、非重叠区间规则的推断解释、跨片段背景比较与 motif 机制归因。应把它当作改进功能证据结构的研究,而不是人群复杂性状广泛上位性的定量证明。
核读依据为上传的45页 v1全文,包括 Methods 和主图1–6;独立补充材料下载返回 HTTP 429,未成功取得,因此表 S1–S7 和独立补图没有逐项核验;涉及它们的结果仅按主文报告,不当作已经完成的实现审查。所有结果均为作者报告或本笔记明确标出的代数推导,未重跑 MPRA 原始计数。
本页三幅图为论文原图的无损图像提取,按 CC BY 4.0 标注作者、图号、来源与许可证;未重新绘制实验结果。