ColocBoost:联合定位跨细胞类型、跨组学的共享遗传信号
Integrative multi-omics QTL colocalization maps regulatory architecture in aging human brain
ColocBoost 在多任务梯度提升中联合选择变异和共享性状,以 LD 平滑保留定位不确定性。v3 全文补充了概率校准与分样本重现证据,并明确较强残差相关可能造成 FDR 膨胀。
本文目录
v3 全文解读|2026-09-06 选读。 原稿于 2025-04-20 首次公开,v3 于 2026-09-04 更新,尚未经同行评议。本次按 v3 正文、Methods、Table 2 和原图重新核验;所读 61 页 PDF 含补充图表图注,但不含独立 Supplementary Note 正文及补充数值表,相关补充实验按主文报告解释。v3 论文 · 全文 PDF
多信号共定位中的跨性状借力
单细胞 QTL 常受 donor 数量和稀有细胞检测功效限制:一个变异在 bulk 中信号很强,在某类细胞或疾病 GWAS 中可能较弱;同一区域还可能存在多个相互连锁的因果变异。ColocBoost 将变异选择和共享性状识别放进同一个拟合过程,研究重点是如何借助跨性状信息提高功效,同时避免把 LD 造成的信号重叠误判为共定位。它与先分别 fine-map、再做两性状共定位的分析路线形成了有价值的比较。
多任务回归与自适应联合更新
对性状 ,模型为 ,其中表型居中、基因型标准化,不同性状可以有不同样本量。共定位对应同一变异在两个或更多性状中具有非零效应;同一区域允许多个效应及不同的共享性状组合。输入可为个体层数据,也可为汇总统计与适配的 LD 信息。
每轮迭代在残差上寻找能同时改善多个性状拟合的变异,再决定哪些性状应共同更新。Single-Effect Coupler(SEC)并非仅凭两个 lead SNP 的 LD 高便宣布共定位:v3 的两性状说明同时考虑候选变异相同或高度相关,以及 profile likelihood 所反映的效应相近程度,再执行以下操作。
| 残差中的候选关系 | 更新方式 |
|---|---|
| 联合候选与两侧最佳候选均相容 | 用 SEC 联合安排弱更新,并保留各性状的平滑权重 |
| 联合候选与两侧均不相容 | 分别更新各自的最佳变异 |
| 一侧被更强的性状特异信号主导 | 用 D-SEC 暂缓联合更新,先处理强信号,再比较更新后的残差 |
这种递进过程旨在减少强信号遮蔽弱共享效应,以及 LD 导致的边际关联误配;一次迭代的相容性判断本身并不是共享因果变异的正式检验。疾病优先模式的 E-SEC 则以目标 GWAS 当前最佳候选为起点,在相容的分子性状中重新寻找联合候选,优先拟合与疾病有关的共享分量。
从 LD 平滑概率到 CoS 与 VCP
v3 对不确定性的构造给出了更完整的解释。对单个性状的一轮更新,算法用平滑概率分布替代硬选一个 SNP:
来自变异与当前残差的关联强度, 同时利用与最佳候选的 LD 和残差关联证据, 控制分布的集中程度。这里的“proximity”主要指 LD 关系,而非基因组物理距离。作者将其解释为由平滑优化导出的 Gibbs 分布,明确区别于贝叶斯模型下的后验。
拟合后,算法把相关 SEC 轮次聚为单效应分量 ,按 profile log-likelihood 的改善量加权平均各轮概率,得到性状内的 。随后对共享性状集合 进行对数汇合并归一化:
**CoS(Colocalization Confidence Set)**按 排序,取累计质量达到默认 0.95 的最小变异集合,并保留其共享性状配置;此外还过滤低 LD 纯度和贡献过小的分量。VCP再跨分量聚合:
因此 VCP 并非任意的排序分数,而是有明确概率构造和经验评估的变异层面共定位量;其用途类似 PIP,但不是由完整贝叶斯生成模型计算的后验包含概率。跨分量聚合采用条件独立近似,不能只因逐步残差拟合就把独立性视为已证明。95% 累计质量也不自动给出所有场景下的 95% 频率学覆盖或 FDR≤5% 保证。
ROSMAP 基因型模拟中的校准与功效
模拟使用 1,162 名 ROSMAP 个体的真实基因型,选取不同 TAD 中的 1,287 个 cis 区域,考察多个因果变异和不同共享性状配置。xQTL 主实验将每个因果变异的表型方差解释比例设为 5%;较弱的目标性状在主要疾病优先实验中设为 2%–4%。这些设定用于在给定样本量下比较强弱信号,不是对真实 GWAS 效应大小分布的完整模拟。
CoS 层面的 FDR 同时惩罚两类错误:集合未包含真实因果变异,或共享配置纳入了不共享该效应的性状。功效按正确捕获的真实变异–性状关系评估,不能与单纯的位点检出率混用。v3 延续主实验平均功效 0.934、FDR 低于 5% 的报告;在部分两性状场景 COLOC v5 表现相近,弱目标性状和较复杂配置更能体现联合建模的收益。
比较设置也影响解释:作者为 COLOC 等方法从变异概率构造类似的 95% 集合,COLOC 的共享假设要求高于其他假设,而非一律采用 。与 OPERA 的比较则统一到基因/区域层面,不能把不同粒度的功效直接并列。
v3 Figure 2f–g 增补了单性状特例 FineBoost 的概率评估:其 VPA 与 SuSiE PIP 在图示模拟中相关约为 0.97–0.99,分箱概率与观测因果频率也较吻合。这加强了单性状概率解释的经验依据,但不能代替多性状 VCP 在各种残差相关和共享配置下的校准检查。
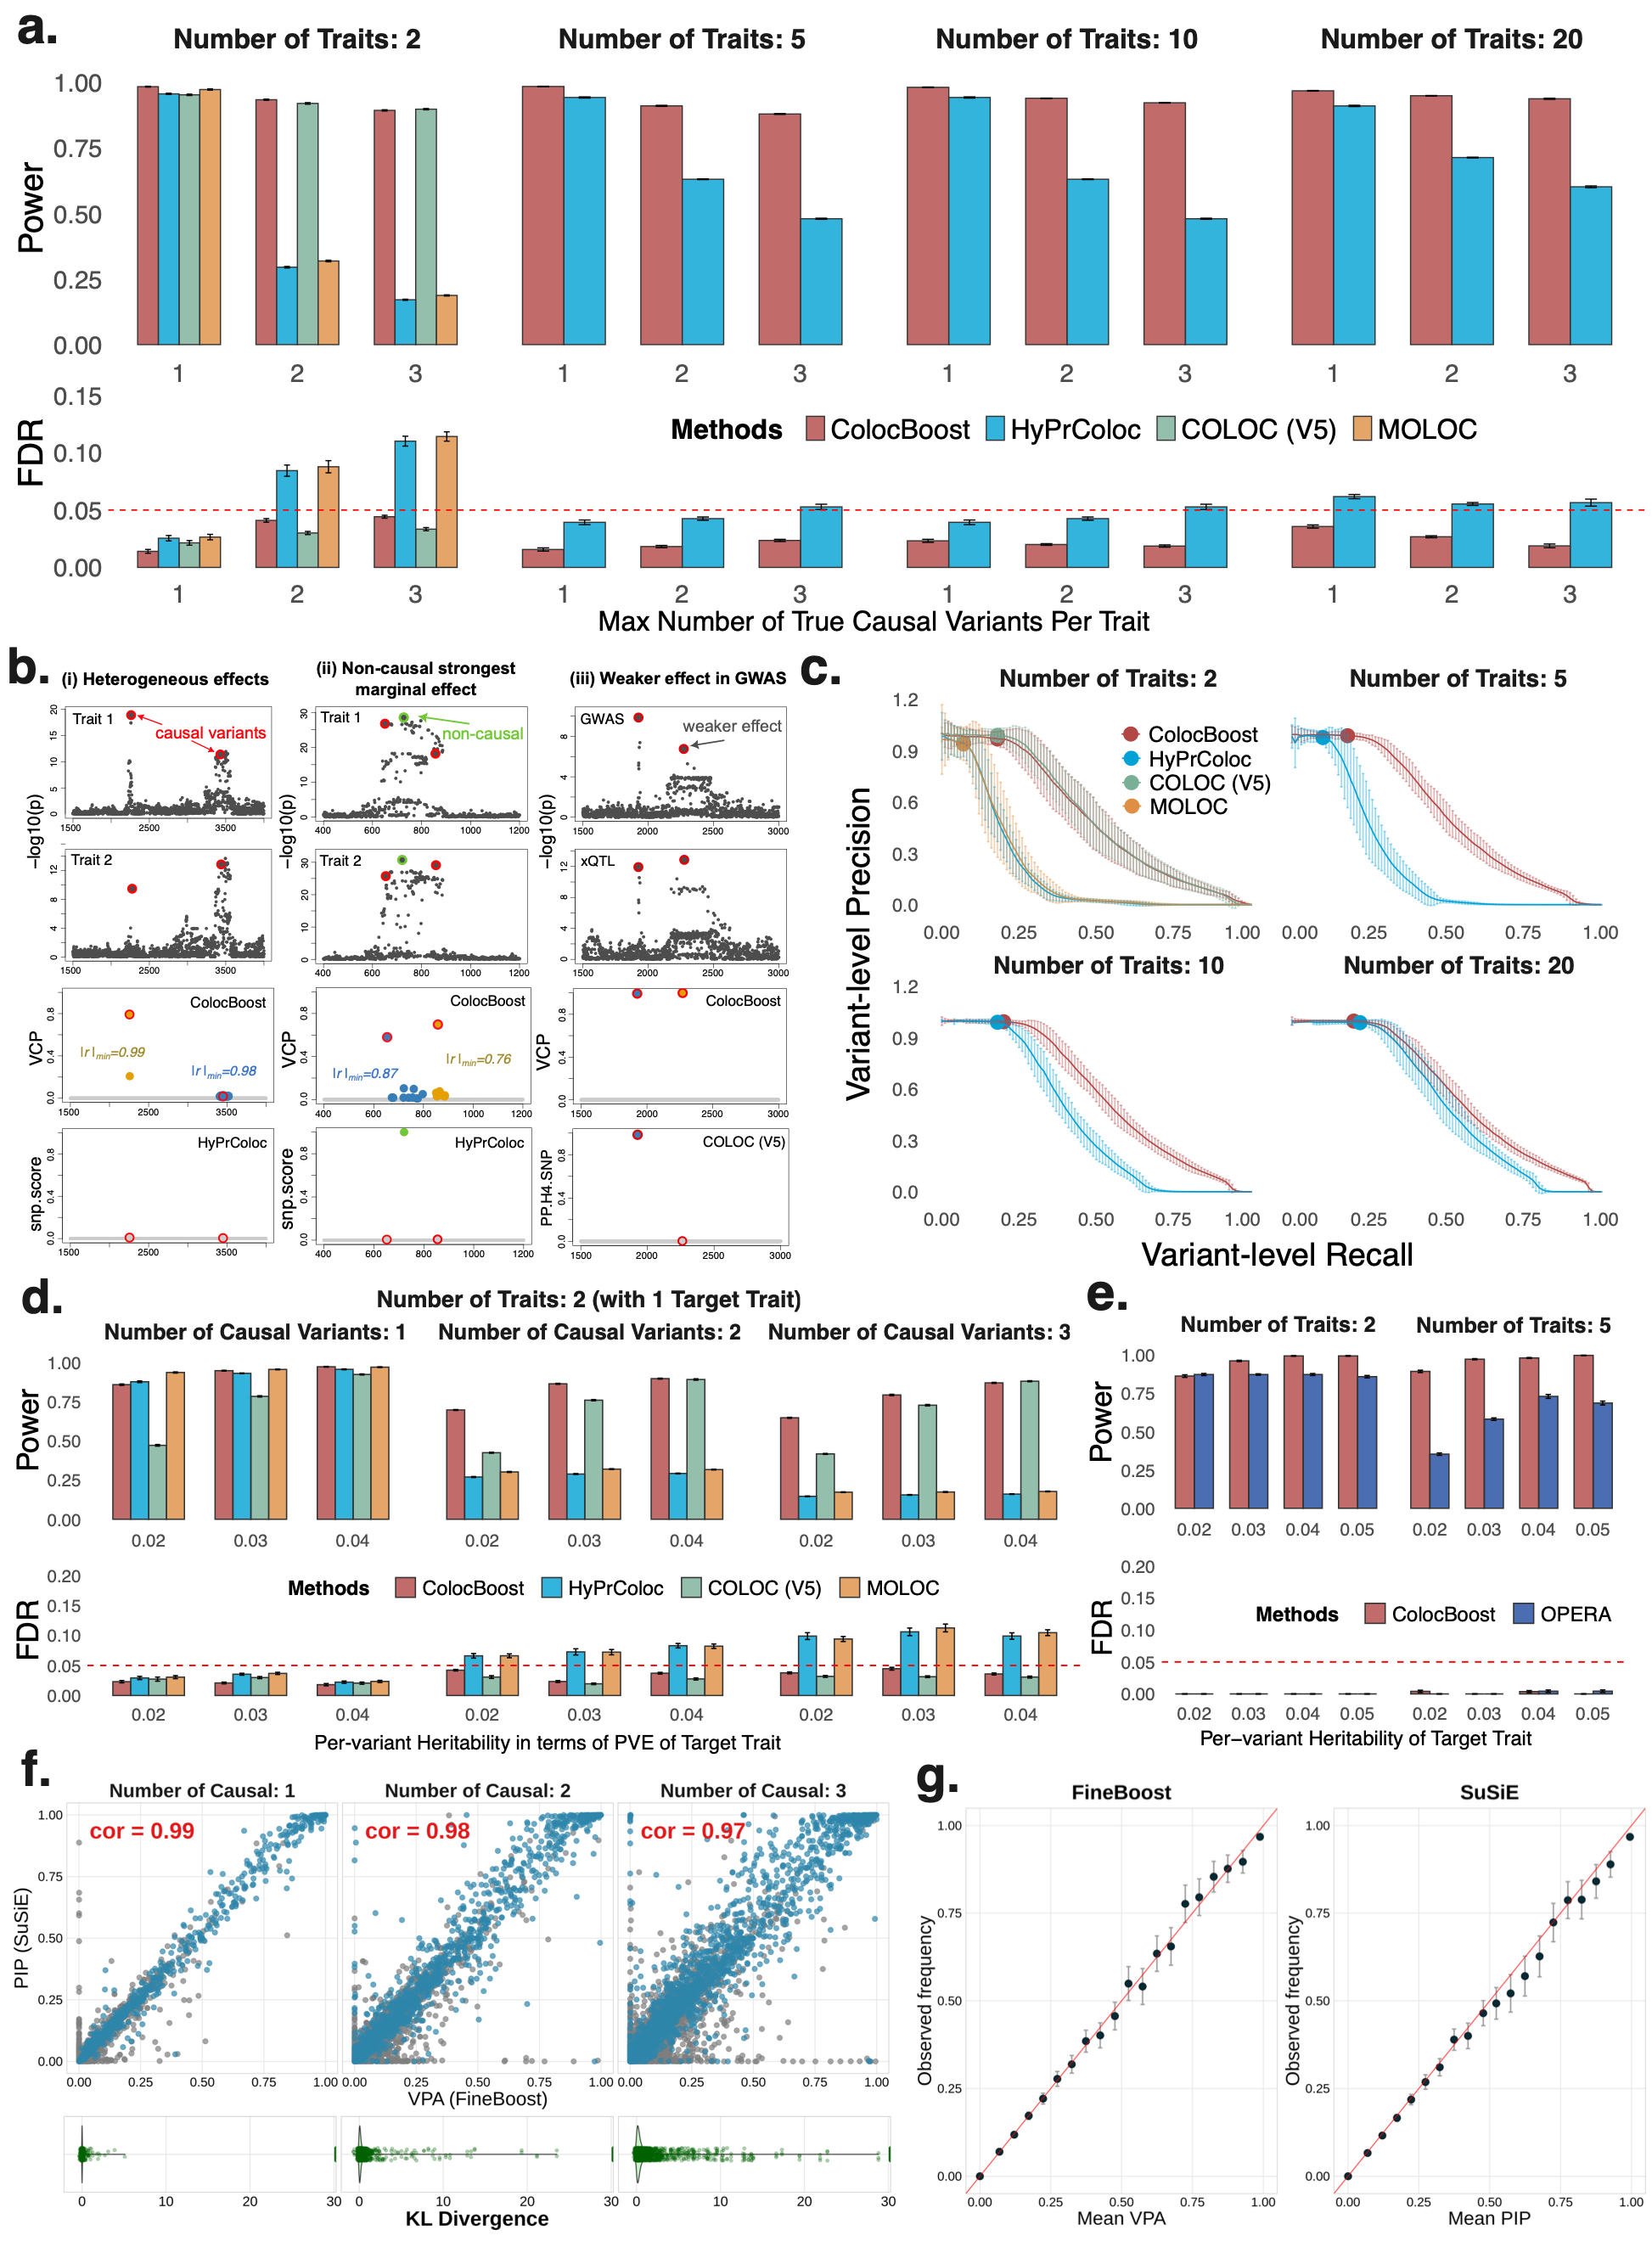
原文 Figure 2(v3):模拟中的多性状共定位性能。a 比较 2、5、10、20 个性状及不同因果变异数下的功效与 FDR;b 展示异质效应、LD 代理产生最强边际信号以及弱 GWAS 效应的实例;c 比较变异层面的精确率–召回率;d、e 分别检验疾病优先模式及与 OPERA 的基因层面对比。f、g 仅针对单性状特例 FineBoost,比较 VPA 与 SuSiE PIP 及各自的模拟校准;这些结果不等于多性状 VCP 的一般校准保证。
Cao et al., medRxiv v3 (2026-09-04), Figure 2 · CC BY 4.0 · 原图未修改 · 原文图 · 放大ROSMAP 的 17 组 QTL 与多组学信息增益
研究分析 16,928 个基因,整合 6 类脑细胞的单核 RNA-seq pseudobulk eQTL、4 组 bulk eQTL、6 组 productive/unproductive sQTL,以及 1 组 pQTL。bulk eQTL 中包含外周单核细胞,因此并非所有测定都来自脑组织。以下为 v3 Table 2 的实际分析样本量:
| 数据 | donor 数量 |
|---|---|
| 6 类细胞 pseudobulk eQTL | 各 419 |
| bulk eQTL:DLPFC / AC / PCC / 单核细胞 | 784 / 593 / 441 / 226 |
| bulk sQTL:DLPFC / AC / PCC,各含两类剪接 | 806 / 603 / 449 |
| DLPFC pQTL | 416 |
AC 沿用原表缩写,Methods 与 Table 2 对其全称存在不同表述。作者概述中的平均样本量 595 也不能直接由这 17 组样本量的简单平均重现,故以分层规模为准,不将其解释为完整配对的多组学 donor 数。
v3 正文报告 18,654 个共定位事件,涉及 11,257 个基因、16,504 个不同的 95% CoS;摘要仍为 16,503 个不同事件。事件数、基因数和去重集合数应分别理解,摘要与正文去重计数相差 1 的原因仍不明确。
10,237 个事件涉及至少一类脑细胞 eQTL。仅保留 10 个 eQTL context 的消融分析能发现其中 82.1%,其余 17.9% 需要加入 sQTL/pQTL 后才能检出。这支持跨分子层的统计信息增益;但“只在一类细胞检出”仍可能反映功效差异,不能直接推断其他细胞中的效应严格为零。
分样本重现与外部功能证据
v3 将 ROSMAP DLPFC eQTL 数据随机拆分后,与同一份 AD GWAS 共定位:二分之间共享的位点为 ColocBoost 26 个、COLOC 14 个。另将 UKB LDL GWAS 二分并固定 GTEx 肝脏 eQTL,跨分组共享位点分别为 30 和 19 个,完整数据发现的恢复率分别为 65.7% 和 51.5%。这是固定另一侧数据时的重现性分析;完整数据的发现不是已知真值,不能把恢复率解释成准确率或独立外部验证。
功能支持来自不同证据层级:K562 CRISPRi/STING-seq 的调控元件–基因关系、脑组织 promoter-capture Hi-C 的物理接触,以及 ENCODE-rE2G 的预测 enhancer–gene links。与这些目录的一致性提供相互补充的支持,但不能据此声称所有新增脑或 AD 位点都已完成相关细胞背景中的实验验证。
作者还把 VCP 汇总为连续功能注释,在 57 个复杂性状的 S-LDSC 中评估遗传力富集及条件贡献。富集说明注释与遗传力分布有关,不是这些分子表型介导疾病遗传力的比例。
AD 共定位:集合层面证据与变异定位不确定性
AD 联合分析的 188 个事件对应 120 个不同位点,成对 COLOC 结果并集(COLOC-union)为 48 个,因此 2.5 倍是位点层面的比较。Figure 6a 中有 63 个 ColocBoost 位点未与同一 GWAS 的 fine-mapping 集合重叠;正文的 61.8% 存在分母疑义,这里保留可由原图核对的计数。
遗传力的比较对象也必须区分:正文报告 ColocBoost 集合对应的 AD 遗传力接近 COLOC-union 的两倍;将 ColocBoost 与 GWAS fine-mapping 集合取并集后,估计解释量是单独 fine-mapping 的约 1.6 倍。不能把这两句合并成“ColocBoost 单独比 fine-mapping 高两倍”;作者也提醒单疾病 LDSC 估计可能不稳定。
BLNK 的 AD 关联为提示性水平()。其 CoS 包含 22 个高 LD 变异,最高 VCP 仅 0.095,却有集合层面的 AD、微胶质细胞及 bulk eQTL 共享证据。若仅用 VCP>0.1 筛选单变异,会漏掉这个集合;反过来,检测到 CoS 也不意味着已经确定其中某个变异为因果变异。
CTSH 有三组 CoS,其中只有一组与 AD 共享,同时涉及星形胶质细胞、兴奋性神经元 eQTL、unproductive sQTL 和 pQTL。该组含两个高相关变异(),其中 rs2289702 的 VCP 为 0.415;另外两组并未与 AD 共定位。表达、剪接和蛋白效应的对应关系为调控机制提供线索,尚不能据此确定唯一因果变异、作用方向或中介链条。
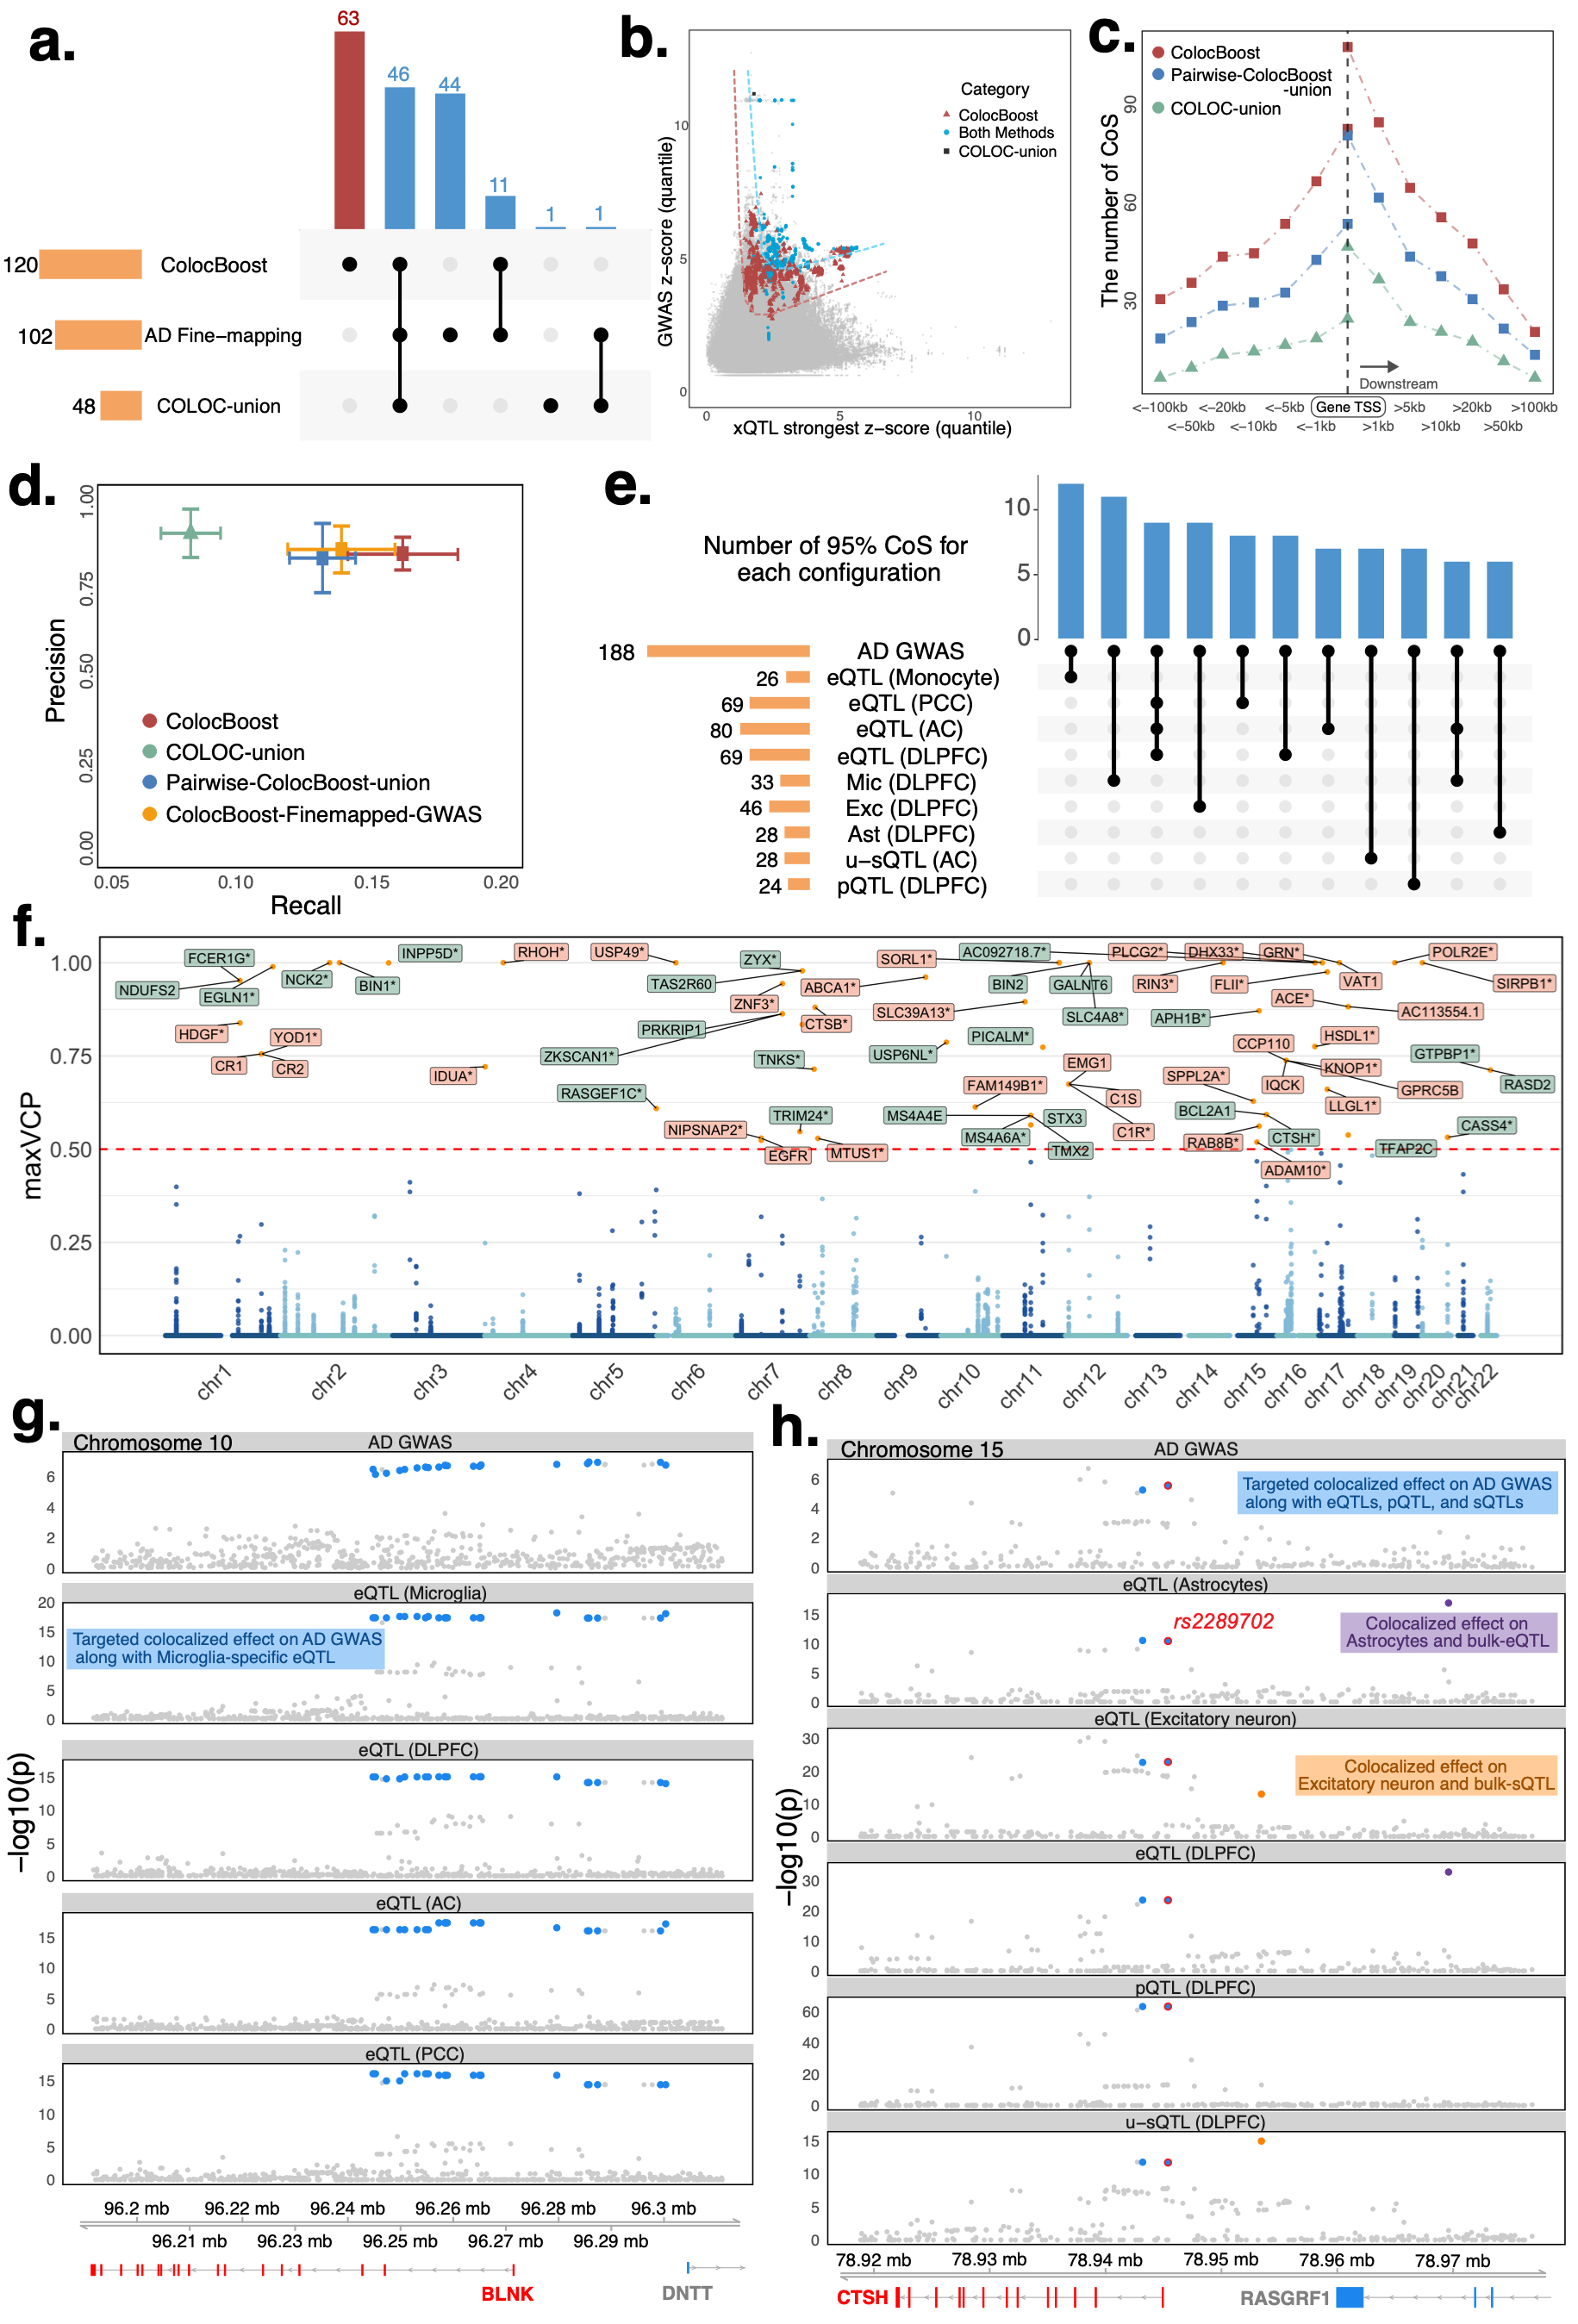
原文 Figure 6(v3):AD GWAS 与 xQTL 的共定位结果。a 比较 ColocBoost、COLOC-union 与 AD 精细定位集合的重叠;b、c 分别显示关联强度和距基因 TSS 的分布;d 以 ENCODE-rE2G 预测的增强子–基因链接作为外部参照比较精确率和召回率;e、f 展示跨 xQTL 的共定位配置与全基因组 MaxVCP。g 的 BLNK 实例表明高 LD 可使概率分散于整个 CoS;h 的 CTSH 显示同一位点存在不同的跨细胞类型和分子层共定位配置。功能链接和共定位支持机制假说,但不能据此确认疾病介导关系。
Cao et al., medRxiv v3 (2026-09-04), Figure 6 · CC BY 4.0 · 原图未修改 · 原文图 · 放大对方法开发的启发与边界
当前默认实现不显式建模跨性状残差相关。v3 Discussion 明确报告:残差相关 时,部分因果配置会出现 FDR 膨胀。ROSMAP 中较低的估计残差相关不能转化为“样本重叠总是安全”;共享样本和残差相关是相关但不同的问题。
LD 参考不匹配同样会影响定位和错误控制。v3 报告的不同 LD panel 敏感性实验主要针对单性状 FineBoost,不能直接推广为多性状 GWAS–xQTL 联合分析的保证。大量高度相关的 ATAC 或甲基化特征仍有计算扩展问题,当前线性模型也不能自动捕获非线性调控关系。
对方法开发,可考虑把 AlphaGenome 等功能预测作为平滑或联合更新的辅助信息,但需要重新检查信息重复使用、概率校准和 FDR。v3 将功能注释引入 SEC 仍列为未来方向,这不是当前版本已完成的功能。
代码与复现:ColocBoost R 包 · 官方教程 · 论文分析代码与数据 · 数值结果存档